Ácidos Nucleicos
-Concepto e importancia biológica:
Las funciones básicas de los seres vivos las llevan a cabo las proteínas, cuya síntesis está dirigida y controlada por los ác.nucleicos.
Contienen el "prospecto"(las instrucciones) para la construcción de un organismo a partir de sus proteínas.
Los ácidos nucleicos poseen un programa que cuando se les ejecuta,da lugar a un ser vivo que es capaz de nutrirse,relacionarse y reproducirse.
-Hay dos tipos de ácidos nucleicos: ADN y ARNs
Ambos son polimeros de unos monomeros nucleótidos.
-Nucleotidos,enlaces y funciones:
Los nucleotidos son los monomeros de los ác.nucleicos.
Los nucleotidos estan formados de tres moléculas unidas.
-Pentosa-B-D Ribofuranosa(ARN)
-B-D Desoxirribofuranosa(ADN)
-Ác.Ortofosforico H3PO4
-Bases nitrogenadas, son las que diferencian a un nucleótido de otro
-Púrica → adenina, guanina
-Pirimidínica → timina, citosina, uracilo
Los dobles enlaces son resonantes (cambian de posición), lo que hace que haya muchos electrones deslocalizados, es decir, libres, produciendo cargas fluctuantes que les permite a las bases nitrogenadas capturar protones (H+); característica exclusiva de las bases del nitrógeno.-Púrica → adenina, guanina
-Pirimidínica → timina, citosina, uracilo
Las bases orgánicas son de nitrógeno. El -OH del carbono 1 de la pentosa con la base púrica o base pirimidínica forma un enlace glucosílico (entre dos bases), el enlace carece de puente de oxígeno.El -OH del carbono 5 de la pentosa se une con un -OH del ácido fosfórico formando un enlace éster. Todo el conjunto se llama nucleótido 5' monofosfato.
Unidos a otras moléculas forman compuestos de gran importancia biológica.
Compuestos derivados de los nucleótidos no nucleicos:
Coenzimas:
- AMP → adenosin monofosfato- ADP → adenosin difosfato - ATP → adenosin trifosfato
Forman un enlace de alta energía por la repulsión eléctrica del fósforo.
Estos enlaces sirven para almacenar energía. Se rompen fácilmente por hidrólisis y liberan la energía que necesitaron para formarse, por eso, funcionan como enzimas transportadores de energía.
La energía química, de enlace, es la única forma de energía utilizable por los seres vivos.
Coenzimas transportadores de energía : ATP / UTP / GTP / CTP
-AMPc: (adenosin monofosfato cíclico)
Es el nucleótido de adenina que en el carbono 5' tiene un ácido fosfórico que forma un segundo enlace con el carbono 3' de la adenina. El enlace es un enlace éster intramolecular.
El AMPc se conoce como el segundo mensajero. Es un mediador entre moléculas extracelulares portadoras de información, como ; las neuronas y los neurotransmisores, en el interior de la célula es donde tiene su efecto.
Es el responsable de la respuesta celular a la hormona. La hormona es el primer mensajero.
-Nucleótidos 5' más otras moléculas:
Forman: NAD+, NADP+, FMN+, FAD+
Todos son coenzimas redox, transportadores de electrones y protones.
Enlace fosfodiester o enlace nucleósido:
Es un tipo de enlace covalente que se produce entre un grupo hidroxilo (-OH) en el carbono 3' y un grupo fosfato (H3PO4) en el carbono 5' del nucleótido entrante, formandose así un doble enlace éster.
De esta forma se unen cientos y miles de nucleótidos.
Por convenio se dice que el primer nucleótido de una cadena es aquel que tiene el carbono 3' libre. El último sería el carbono 5' combinado con el fósforo (fosforilado).
Las cadenas van en dirección 3' → 5'.
-Estructura de los ácidos nucleicos:
1-Del ADN
Polímero lineal de Dexosirribonucleotidos 5´ monofosfato de A,T,G,C.Cuando se pone en medio acuoso espontaneamente(igual que las proteinas), toma un estado nativo,su forma especial,tridimensional.Hasta 4 niveles estructurales(E 1º,2º,3º,4º)cada uno depende de la anterior.
-La estructura primaria
Es la unión de los nucleótidos con enlaces fosfodiester,dado que los nucleótidos son diferentes (A,T,G,C) tienen información genética,orden,secuencia de nucleótidos.
Ej: AATCCCGG ATCGCGCT Distinta información genética
La secuencia es especifica de especie y de individuo.
La información genética es igual a la secuencia de nucleótidos e igual que los planos para contruir las proteinas.
-La estructura secundaria
Se descubrió de una forma indirecta y rocambolesca un químico llamado Chargaff que realizó un análisis de ADN.Descubrió que:
A G púricas
▬ = ▬ = ▬▬▬▬▬ = 1
T C pirimidínicas
▬ = ▬ = ▬▬▬▬▬ = 1
T C pirimidínicas
Dos biologas Franklin y Wilkin hicieron radiografías del ADN. Descubrieron que el ADN era helicoidal y fibroso.
Watson y Crick eran investigadores, descubrieron el modelo de la doble hélice. Este modelo explicaba los datos de Chargaff, los rayos x y sus propiedades.
Según su modelo, el ADN forma dos cadenas en hélice enfrentadas por las bases y unidas entre sí por puentes de hidrógeno, igual que una escalera de caracol en la que los pasamanos serian las pentosas y fósforos y los peladaños las bases enfrentadas y unidas por puentes de hidrógeno.
Según su modelo es una hélice a derechas, las cadenas son antiparalelas.(3´---5´,5´---3´)
Las dos cadenas están trenzadas, para separar las cadenas hay que destrenzarlas. Son complementarias, siempre va unida A-T, G-C, lo sacaron de Chargaff, se forma el máximo número de puentes de hidrógeno que le dan estabilidad a la hélice.
El diámetro de la cadena es de 20 Ã (Amstrong), siempre se une una base púrica con una base pirimidínica.
Las cadenas están unidas por puentes de hidrógeno que son débiles, explica la fácil desnaturalización y renaturalización del ADN.
El diámetro de la cadena es de 20 Ã (Amstrong), siempre se une una base púrica con una base pirimidínica.
Las cadenas están unidas por puentes de hidrógeno que son débiles, explica la fácil desnaturalización y renaturalización del ADN.

Se debe resolver el problema de como meter cadenas con 1.000.000 de nucleótidos en un espacio tan reducido (célula).
Es diferente en los procariotas y en los eucariotas:
-Procariotas, tienen 0.003 mm de longitud. Lo consiguen superenrollando la cadena de ADN, la cierran sobre sí igual que un cromosoma circular. Todo ello sin ayuda de las proteínas.
-Eucariotas, su tamaño es 1.000.000 veces mayor que las procariotas. El ADN tiene 2 metros de longitud, dentro de un núcleo que tiene 0.000000002 m. de diámetro. Lo consiguen con la ayuda de las proteínas, la doble hélice da dos vueltas sobre un cilindro de proteínas, llamado nucleosoma y el conjunto forma un collar de perlas.
Se enrolla sobre sí mismo y da lugar al selenoide, éste se pliega y repliega formando bucles, se le conoce como cromatina (forma activa del ADN).
Cuando se va a efectuar la división, los bucles se compactan y empaquetan, se hace visible, esto es la cromatida.


Se produce una división,se compactan y empaquetan(condensa el ADN)formando la cromatida y dos cromátidas forman un cromosoma,4º estructura.
-Estructura de los ARNs.
Los ARNs son polímeros lineales de ribonucleótidos 5´monofosfato(ribosa) de adenina, guanina, citosina o uracilo (cambia timina), también pirimidínica.
Tiéne más cargas negativas que la Dexosirribosa.
La cadena es más inestable que el ADN.La cadena de ARNs se rompe más facilmente.
A/G/C o uracilo, también es pirimidinica.
La estructura de los ARNs es monocatenaria, pero complementaria consigo misma, formando puentes de hidrógeno intracatenarios, doble hélice en la estructura secundaria. La parte no complementaria forma las discontinuidades, son los bucles.
Esto da lugar a la estructura terciaria, en forma de hoja de trébol, es el ARN transferente.
Esto da lugar a la estructura terciaria, en forma de hoja de trébol, es el ARN transferente.
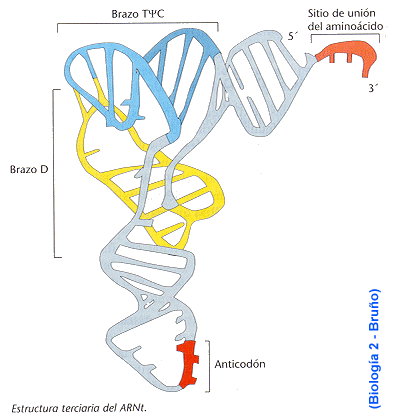
1)ARN mensajero:
Son monocatenarios,solo tiene una estructura primaria.Tiene una relación lineal con la primera estructura del ADN.Son complementarias.
Copia información genética del ADN, su código genético, y lo transmite a la célula(lo lleva hasta los ribosomas encargados de fabricar las proteínas)
El ARNm tiene unos pocos minutos de vida antes de ser degradado,es lo óptimo,de otro modo, la proteína se fabricaría indefinidamente.
Como todos los ARNs, se fabrica en el núcleo,a partir del ADN y realizan su función en el citoplasma.Constituye entre 3 y 5% del ARN total.
2)ARN ribosómico
Constituye entre el 80/85% del total.
Es monocatenário(estructura primaria).
Partes complementarias donde forma doble hélice(estructura 2º) y discontinuidades que en conjunto dan su estructura terciaria.
Los distintos ARNr se combinan con 70 proteínas para formar los ribosomas, que es el único orgánulo macizo que posee la célula.
Cuya función es leer el código genético del ARNm y fabricar la proteína expresada en ese gen. Leen y traducen el código genético.
3)ARN transferente
Constituye el 10% del total de los ARNs celulares. Son pequeñas moléculas, que tienen un 80% de bases complementarias de su cadena, donde se forman una doble hélice(estructura secundaría)y unos bucles, formando una estructura en aspecto de boomerang .Son específicos de aminoácidos(ARNt) que se une por su extremo 3´a una adenina(siempre ACC).
También son específicos de anticodón.

ARNt se forman en el núcleo a través del ADN y pasan al citoplasma donde realizan su función que es transportar su aminoácidos hasta los ribosomas donde son ensamblados en el orden indicado en el ARNm, en el gen de ADN.
Funciones biológicas de los Ác.Nucleicos
1º)ADN,el código genético
El ADN se divide en fragmentos en genes, estos genes contienen la información genética para fabricar las proteínas(planos para construir las proteínas).
Los que no contienen información genética son los que fabrican ARNr y ARNt.
Esto se llama código genético, el código genético es un idioma, tiene letras(A,T,C y G),las letras se unen formando palabras, necesitamos palabras tanto como conceptos(20 palabras = 20 aminoácidos)
Las palabras forman frases. Frases con sentido completo(gen).

Proteína completa o ARNr y ARNt.
En las células procariotas los genes son continuos en cambio en las células eucariotas los genes son discontinuos.

Características del código genético
-Es universal, es igual para todos los seres vivos, desde virus a nosotros.
Esto quiere decir que procedemos de un antecesor común.
-Es no solapado, quiere decir que una base solo pertenece a un triplete.
-No se señala ni con puntos ni comas ,pero si tiene señales de iniciación. AUG y de terminación UGA, UAA y UAG.

-Es degenerado, en un mismo aminoácido esta determinado por varios colores.
Ej: Lucina/CUC/CUG/CUU/CUA(codón).
Es degenerado ,pero no imperfecto porque entonces sería un codón(varios aminoácidos distintos .Es degenerado para facilitar la síntesis de proteína.

La complementariedad codón/anticodón solo afecta a las 2 primeras bases la 3º se tambalea, vacila lo que facilita la llegada y salida de los ARNt como debe ser, a los ribosomas durante la síntesis de proteínas.
2º)Transcripción
La primera estructura de ADN determina la estructura de una proteína.
Se podría hacer directamente, sin embargo no se hace, en primer lugar porque el ADN es enorme y además estan en el núcleo, mientras que los ribosomas que son los que sintetizan a la proteína, están en el citoplasma.
Se forma un intermediario, el ARNm que lleva la información de la estructura primaria del ADN desde el núcleo hasta los ribosomas.
La síntesis del ARNm es la trascripción(por extensión es la síntesis de todos los ARNs).
La trascripción consiste en la síntesis de un ARN complementario(A/U G/C C/G T/A)
ARN polimerasas son las enzimas más complejas del universo.
Estas se fijan a regiones promotoras de ADN(T,A….son distintas en procariotas y eucariotas)
Están hacen que desarrollen una vuelta de ADN y utiliza una de las dos cadenas de ADN como molde para formar un cadena de ARN complementaria .Al avanzar desarrolla otra vuelta de hélice, y la anterior se vuelve a enrollar y así hasta que llega al final del gen en el que se desprende la polimerasa(ARN).
La trascripción es semejante en la células eucariotas y células procariotas con una diferencia, que los genes en procariotas son continuos, entonces el ARNm no necesita maduración, puede ser directamente Traducido por los ribosomas(ARNt,ARNr siempre maduración postranscripción).
En las células eucariotas los genes son discontinuos.(intrones y exones)
Estos no pueden ser traducidos directamente ,necesita una maduración para eliminar los intrones .Esta maduración la realiza unas enzimas llamadas ribonucleoproteínas pequeñas nucleares(RNPpn)
Como su nombre propio indica esta formada de proteínas y ARN que es complementario con las secuencias iniciales y finales de los intrones ,a los que se une cortándolos.
Una molécula de ADN tiene dos cadenas de ADN.
En las células eucaritoas, después se le añade algunos(unos 30) nucleótidos al extremo 5´ se le pone una caperuza (tope) de 7-metil Guanosina trifosforilada, para que el ribosoma reconozca el comienzo del gen.
En las células procariotas solo un ARN polimerasa, ADN depensiente.
En los eucariotas tienen tres:
-ARN polimerasa I---ARNr
-ARN polimerasa II---ARNm
-ARN polimeras III---ARNt
3º)Duplicación, autoduplicación o replicación de ADN.
-El ADN contiene la información genética, cada vez que la célula se divida,debe formarse una nueva copia idéntica para repartir entre las dos células hijas.

-Antes de dividirse debe formar una copia identica.
-Ya en 1953 donde sacaronladoble hélice del ADN Watson y Crick.Propusierón el mecanismo de duplicación de las cadenas de ADN.
-Hipótesis conservativa

-La duplicación ocurre al final de la interfase en la llamada fase S,ciclo celelar,fases en la vida de la célula, que son la interfase 99´5% vida normal ,realiza sus funciones, al final de la interfase entra en división 0´5% vida de la célula).
Básicamente la duplicación consiste en utilizar el ADN polimerasas como molde,las cadenas de ADN para formar nuevas cadenas complementarias.
-Hay dos ADN polimerasas:
-ADN polimerasa I
-ADN polimerasa III
Son las más complejas de todas las enzimas.
ADN polimerasa I tiene varios centros activo:
-Cadena molde
-Actexonucleasica(mira otras)(si hay un error,no complementario, lo corta y rellena el hueco correctamente)
-Localiza OH.Libre el carbono 3´(último nucleotido)cadena en formación.
-Nuevo nucleotido trifosforilado y complementario con el molde(si es así forma ester 5´-3´)
El proceso de duplicación es semejante en los procariotas y en los eucariotas.
La replicación comienza por el origen de replicación.
En este origen se separan las cadenas.
Progresa esta duplicación a lo largo de la cadena, como una horquilla de replicación (progresa como una cremallera al abrirse).
ADN polimerasa, le ocurre lo mismo que el ARN polimerasa, que solo saben utilizar como molde 3´--- 5´


-A diferencia de lo que pasa con los ARN polimerasa (saben empezar una cadena),una cadena de ADN polimerasa(no saben) solo continua una cadena que ya está empezada, así la duplicación comienza con un ARN cebador,primer sintetizado por la primasa(ARN polimerasa)que luego continua la ADN polimerasa III.
-Posteriormente se corta el primer y se rellena el hueco dejado por el ARN cebador. Esto lo hace el ADN polimerasa I.
Se unen los fragmentos mediante una ligasa.Una vez en la hebra conductora y muchas veces en la hebra retardada.
-Helicasa, rompe puentes de H de ADN para separar sus cadenas.
-Topoisamerasa(doble hélice trenzada) Al separar cadenas, se produce un superenrollamiento causado por el desenrollamiento.La topoisomerasa, relaja el superenrollamiento a causa por el desenrollamiento.
-SSB, proteína estabilizadora de la cadena(molde) sencilla de ADN.
La duplicación es muy compleja, sin embargo se efectúa rapidamente(se polimerizan 45.000 nucleotido por minuto)
Además es muy precisa, sin errores,(comete 1 error por cada 10-100 millones de nucleotidos polimerizados). Si ocurre algún error la ADN polimerasa I, lo corta y rellena el hueco y la ligasa los une.Repara los errores.Sin embargo,no todos son reparados(1 por cada 10000/10000000 nucleotidos polimerizados)(errores=mutaciones)
Si esta mutación no compromete la viabilidad del individuo,es beneficiosa puesto que aumenta la variabilidad genética.
4º)La biosintesis de proteínas en procariotas.
-Previamente se debe transcribir su gen en forma de ARNm(transcripción) por parte de la ARN polimerasa II, que utiliza como molde la cadena 3´-5´ del ADN y forma un ARNm que es complementario y antiparalelo(1º nucleotido es 5´ libre) a ella.Esto ocurre en el núcleo.
Seguida por la maduración en eucariotas del ARNm transcrito.Luego también los aminoácidos deben ser activados(añade energía para que puedan formar enlaces peptídicos)(covalente temperatura de enlace)
-Los ribosomas de los procariotas son los responsables de la síntesis de las proteínas. Se le llama ribosomas 70s (coeficiente sedimentación)
En cambio los ribosomas de eucariotas son 80 s.
Los ribosomas de procariotas tienen dos subunidades. Las dos subunidades se forman por separado en el núcleo, salen al citoplasma ,donde autoensamblan por estereoespecificidad(encojen) en torno a un ARNm.
Posteriormente aparecen propiedades nuevas en los ribosomas:
-Capacidad de interaccionar reversiblemente con otras moléculas(ARNt aminoacil, hidrólisis GTP, o con unas proteínas llamadas factores) que llegan y salen del ribosoma, provocando cambios estructurales en cada molécula del ribosoma y en el ribosoma complejo. Estos cambios desembocan en la síntesis de proteínas.
Básicamente los ribosomas favorecen el acceso de los ARNt aminoacil a su codón correspondiente del ARNm(coloca los aminoácidos en su orden)leen el mensaje y forman enlaces peptidicos, entre sus aminoácidos, traduce.
La biosíntesis tiene tres fases: -Iniciación
-Elongación
-Terminación
4.1)Iniciación
La subunidad 30s de los ribosomas se coloca en el extremo 5´ del ARNm ocupando dos tripletes, AUG codón de iniciación
(…)
4.2.2)Formación del enlace peptídico
-El enlace peptídico lo forma la enzima peptidil transferasa (en 50s)
-Transfiere la energía del enlace éster ARNt aminoacil para formar el enlace peptídico,entre los aminoácidos.
4.2.3)translocación
-Para que ocurra la translocación tiene que llegar otro factor de elongación(diferente a la fijación) más hidrólisis de GTP. El ribosoma se desplaza un triplete en dirección 3´.
-Sale por degenerado.
-Se llama P de peptidil,tiene el ARNt con el péptido en formación
ARNt--Aa--Aa--Aa
-Se llama A de aminoacil, que es donde se coloca un aminoacil ARNt.
-Una nueva fijaciónen A,un enlace peptídico y otra translocación, hasta que se llega a:
4.3)Terminación:
-Había una cadena de formación en P hasta la translocación y se encuentra el anticodón de terminación (UGA, UAA, UAG).
-Este anticodón se encuentra bloqueado por factor de terminación.
-La P transfiere la energía del enlace éster al agua.Porque no hay ARNt.
-Se produce hidrólisis del enlace éster, se libera la cadena peptídica por la hidrólisis y se separan las subunidades del ribosoma.
-En procariotas este proceso tan complejo monta 1400 aminoácidos por minuto tras lo cual se degrada el ARNm si no se formaría constantemente la misma proteína.
4.4)Transcripción en eucariotas:
-Al principio de cada proteína en eucariotas.
-En procariotas, los ribosomas están aislados, una cadena.
-En eucariotas, los ribosomas están unidos.
-Se llama polisomas, que son varias cadenas, se forman al mismo tiempo.
-Ribosomas asociados a la menbrana y ribosomas libres en eucariotas.
-Ribosomas libres (procariotas)
-Los ribosomas se encuentran asociados a la membrana nuclear o a la membrana del retículo endoplasmático rugoso.
-Las proteínas se introducen en el núcleo o retículo endoplasmático rugoso.
-El que tiene el poli A hace que la transcripción que se realiza en la membrana tanto nuclear como la del retículo endoplasmáti8co rugoso. Se pega a la membrana a través de un receptor.
-La transcripción empieza por el 5´,empieza con ribosomas libres (igual que antes).
-Todos los ARNm transcritos a nivel de membrana comienzan por una secuencia de Aa apolares (secuencia hidrofoba o señal).
-Cuando se acerca a la membrana atrae(difunden) a ciertas proteínas intrinsecas(dentro de las membranas)de la membrana (apolares) que difunden en torno a la secuencia señal,
-Por apolares
-Cuando las proteínas intrínsecas tocan la secuencia hidrofoba disolviendose la secuencia señal en las proteínas intrísecas introduciéndose a través de la menbrana igual que un tunel.
-La secuencia señal tien como función permitir la entrada de la proteína en formación a través de lamembrana.
-Detrás entra toda la proteína en formación independientemente de que sea hidrofoba porque la ribunidad 60s estabiliza el túnel.
En ese momento se corta la secuencia señal y queda la verdadera proteína el túnel desaparece.
5)Regulación de la expresión génica:
-Gen determina una proteína,determina un carácter biológico.
-¿Se puede regular los caracteres biológicos o lo que es lo mismo la expresión de los genes? Sí, a través de las proteínas que los determinan.
-Regular el funcionamiento de las proteínas por parámetros generales. Con la temperatura, pH, concentración IsI, concentración de coenzimas,…. Son inespecíficos, afectan a todas las proteínas por igual.
-También por activación/ inhibición enzimática.
-Mediante enzimas reguladores (alostéricos y modulados covalentemente).
-A nivel de los ribosomas, modificando la velocidad de traducción.
-Modificaciones post-traducción(pepsina en vez de fabricarla, fabrica pepsinógeno inactivo que es pepsina inactiva).
-Son formas derrochadoras con el control de la transcripción:
-No se forma ni el ARNm

-¿Se puede regular los caracteres biológicos?
Sí, a través de las proteínas, mediante parámetros generales, pH, Tª
-Control de transcripción ,controlan la velocidad de la traducción.Control postraducción.
Son derrochadores de recursos, más que el control de transcripción.
Permite economizar, adaptarse, a las condiciones cambiante del medio,existe en los eucariotas y procariotas.
En los eucariotas, además un control de la transcripción permite un proceso llamado diferenciación celular.
Diferentes tejidos(muscular, neurona)
Las células se diferencian unas de otras en su estructura y en su funcionamiento, determinadas por las proteínas que las poseen.
Todas las células poseen el total de la información genética.Todas las células podrían fabricar todas las proteínas del organismo.
La diferenciación célular (embrionarias, células madre)(totipotentes)Por la represión irreversible del 90% de su genoma,(pasa en las primeras fases de desarrollo embrionario)(control transcripción irreversible)
En el nuúcleo de la célula, donde se encuentra el ADN

-Control reversible de la transcripción en procariotas.
En eucariotas es semejante pero más complejo.Todas las células procariotas presentan este control reversible de la transcripción, porque las células procariotas siempre estan en contacto con un medio cambiante.
Algunas eucariotas(globulos blancos,hígado,riñon…).
El resto no(neurona, muscular…)
Estan siempre en contacto con un medio estable, medio interno(homeostasis)
-Dos tipos de enzimas:
*Constitutivos(lo forman siempre) ej:glucolisis fotosíntesis,respiración célular, no tienen control de la transcripción, siempre son necesarios
*Inducibles(a veces sí, a veces no) control de transcripción no siempre son necesarios.
1)Teoría del operón
La descubrierón Jacoh y Manod, clarificaron las relaciones moleculares y genéticas durante la inducción/ represión enzimática reversible(sirve para cualquier proteína)
A partir de unos datos de otros, Escherichia Coli(bacteria muy utilizada en los estudios genéticos, E.coli)
-Otros estudiaron que la galactosidasa es un enzima inducible reversiblemente (E.coli).
-Otros descubrieron que una serie de mutantes para E.coli:
-No forma galactosidasa.
-La forman alterada
-Siempre la forma como si fuera constitutiva.
Solo con estos datos Jacob y Monob hicieron un mapa genético con los genes y sustancias responsables de la inducción/ represión de la galactosidasa.

El gen estructural es aquel que se forma en el ARNm(sirve para todas las proteínas)
Estos trres enzimas forman una secuencia multienzimática para la hidrolisis de la lactosa.
i: Gen inhibidor--ARNm--cromosomas--proteína represora activa, tiene un centro activo para el gen O y otro centro activo inductor(lactosa).Suelta al gen O(si se une).
p: Gen promotor--señal reconocida por la ARN polimerasa para comenzar la transcripción de los genes estructurales.
O: Gen operador--tope con la proteína represora, no deja avanzar a la polimerasa, no transcribe.
-Mutación en Z-- galactosidasa alterada.
-Mutación en P--No forma la galactosidasa
-Mutación en O--Siempre forma galactosidasa como si fuera constitutiva(constitutiva-O)
-Mutación en i--Siempre forma constitutiva(constitutiva-i)


